

- 蛇頸龍不是恐龍,而是屬於鰭龍類(Sauropterygia)的海生爬行動物。
- 最早的明確蛇頸龍骨架約兩億年前出現於德國,最後在 6600 萬年前與非鳥類恐龍一同滅絕。
- 化石證據顯示蛇頸龍是胎生,會在水中直接產下大型幼體。
- 鳥類屬於恐龍,所以麻雀和暴龍的親緣關係,比蛇頸龍和暴龍更近。

一提到恐龍,很多人腦中除了暴龍、三角龍,還會浮現一隻在海裡伸著長脖子的「蛇頸龍」。在蛇頸龍的名字裡有個「龍」字,又和恐龍活在同一個時代,就連哆啦A夢電影《大雄的恐龍》裡的嗶之助,原型也是日本發現的蛇頸龍類。所以他真的是恐龍嗎?
但真相是:牠們和恐龍從來就不是同一家人。

蛇頸龍是恐龍嗎?
最簡單的答案 不是。這個答案,出乎很多人的意料之外,蛇頸龍和恐龍都是爬行動物,也曾共享同一個地球,但在演化樹上屬於不同分支。恐龍是陸地上的演化支系,後代包括今天的鳥類;蛇頸龍則屬於重新適應海洋生活的鰭龍類。
什麼樣的動物才算恐龍?
「恐龍」(Dinosauria)這個名稱由英國解剖學家理查.歐文在 1842 年提出,原意約為「令人敬畏的巨大蜥蜴」。不同研究對恐龍的正式系統發育定義略有差異,但核心概念一致。
在骨骼上,恐龍有一系列共同特徵。最容易理解的是四肢大致位在身體正下方,而不像多數蜥蜴向兩側張開;許多恐龍也具有開放式(穿孔狀)的髖臼。不過古生物學家在判斷早期恐龍時,會綜合骨盆、股骨、脊椎等多項特徵,而不是只看單一構造 。還有一個重點,目前還有沒有沒有證據,有任何非鳥類恐龍演化成像蛇頸龍那樣完全以海洋為家。

蛇頸龍屬於哪一類動物?
蛇頸龍屬於蛇頸龍目(Plesiosauria),歸在更大的鰭龍類(Sauropterygia)之下。鰭龍類的祖先原本生活在陸地,在三疊紀重返海洋,成員還包括幻龍、楯齒龍等。
目前最重要的早期蛇頸龍化石之一,是德國出土的萊茵龍(Rhaeticosaurus mertensi)。根據 2017 年發表於《Science Advances》的研究,這具骨架來自三疊紀最末期,約兩億年前,是已知最早的明確蛇頸龍骨架之一,顯示蛇頸龍在三疊紀結束前就已開始分化 。

萊茵龍(Rhaeticosaurus mertensi)圖來至 Rhaeticosaurus mertensi
此後,蛇頸龍在海洋中繁盛超過一億三千萬年,直到約 6600 萬年前的白堊紀末大滅絕才消失。
蛇頸龍是怎麼被發現的?
在1821 年,德拉貝什與康尼貝爾描述了一批特殊的海生爬行動物化石,命名為 Plesiosaurus,意思是「接近蜥蜴」。
不過真正讓世人看清蛇頸龍全貌的,是英國化石獵人瑪麗.安寧。1823 年,她在多塞特海岸發現一具幾乎完整、骨骼仍相連的蛇頸龍,那條誇張的長脖子甚至一度讓學者懷疑是人為拼裝。
更有名的烏龍發生在美國。在1868 年時,古生物學家柯普研究薄片龍(Elasmosaurus platyurus)時,把頭骨裝到了脊椎的錯誤一端,等於把頭接在尾巴上 。這件事後來成為十九世紀美國「化石戰爭」中最著名的插曲之一。
化石戰爭,是 19 世紀末美國古生物學界一場很有名的「搶化石大戰」。主角是兩位彼此看不順眼的學者:馬許和科普。他們為了比對方更早找到新化石、命名新恐龍,展開長年競爭,甚至鬧到互相攻擊、搶挖地盤。雖然這場鬥爭很混亂,卻也意外推動了古生物學發展,讓許多今天耳熟能詳的恐龍陸續被發現。
蛇頸龍的脖子有多長?能像天鵝一樣抬頭嗎?
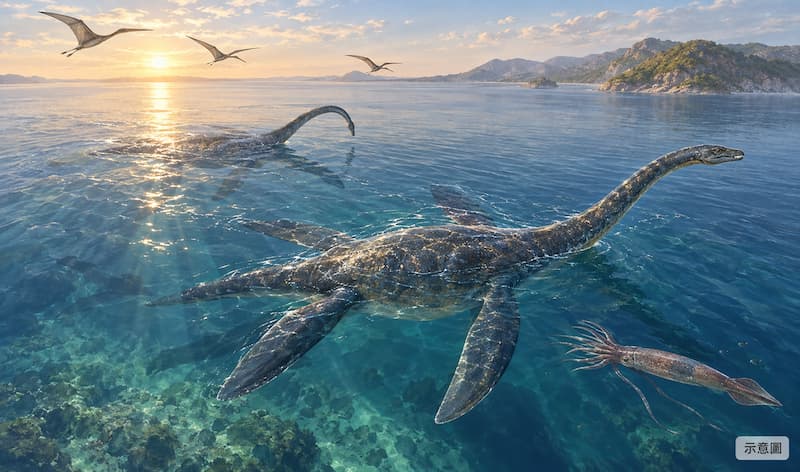
雖然部分蛇頸龍擁有脊椎動物中最多的頸椎,但牠們的脖子可能不像天鵝那樣靈活。
根據 2013 年發表於《PLoS ONE》的重新研究,薄片龍保存的頸椎約為 72 節 。加拿大的阿爾伯塔泳龍(Albertonectes vanderveldei)在 2012 年原始描述中計為 76 節 ,後續研究重新界定頸椎與胸椎交界後,也有學者主張應為 75 節。無論採哪種算法,牠都是已知頸椎最多的脊椎動物之一。對了,人類和長頸鹿都只有 7 節,差距非常之大喔。
在2017 年《Acta Palaeontologica Polonica》的一項功能形態學研究分析了頸椎關節面與頸肋,這篇文章認為蛇頸龍的脖子主要適合向下彎曲,向上、左右與旋轉的活動則相對受限 。研究者據此提出一個蛇頸龍的模型:他認為蛇頸龍身體是機動的平台,脖子像一根偏硬但能向下彎的「取食管」,讓頭部探向下方水層或海床覓食。
不過這是根據骨骼建立的模型,不代表所有蛇頸龍完全不能抬頭,但電影中那種大幅度昂首出水的姿勢,目前缺乏有力的證據支持。
蛇頸龍怎麼游泳?
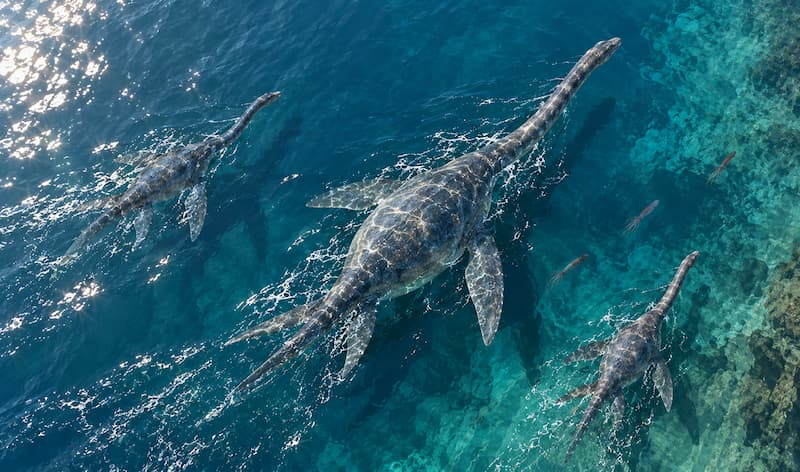
蛇頸龍靠四片鰭狀肢上下拍動,在水中「飛行」前進,而且前後兩對鰭會互相配合。
根據2017 年發表於《Proceedings of the Royal Society B》的研究,用依化石重建的鰭肢模型進行水槽實驗。結果發現在適當的拍動節奏下,後鰭可以利用前鰭留下的水流,推力最多增加約 60%,效率最多提高約 40% 。四片鰭不是各划各的槳,而是一套協同推進系統。
蛇頸龍會下蛋嗎?
目前的證據是不會。目前的化石直接證明至少部分蛇頸龍是胎生的。
而其中的關鍵證據來自美國堪薩斯州出土的多錐龍(Polycotylus latipinnis)。這具成年個體腹部保存著一隻未出生幼體的骨骼。2011 年,歐基夫與奇亞佩在《Science》發表研究,確認這是懷孕的母體與胎兒 。

(Stenopterygius quadriscissus 魚龍化石。圖中可見一隻發育晚期的胚胎部分伸出母體;研究者認為,這個姿勢可能不是生產當下留下的,而是遺體腐敗後受到氣體與壓力影響,被擠出體外。圖片資料引自 Organ 等人(2009))
研究推算幼體出生時可達母體長度約三分之一,而且一胎可能只有一隻。這種「生得少、投資大」的策略,和許多現代海生哺乳類相似。研究者因此推測蛇頸龍可能有育幼或群居行為,不過胎生有直接化石證據,育幼與群居目前還是未知的推論。
嗶之助是恐龍嗎?

不是。嗶之助的原型是日本福島縣發現的雙葉鈴木龍(Futabasaurus suzukii),屬於蛇頸龍類的薄片龍科。
這件化石在 1968 年由當時還是高中生的鈴木直發現,直到 2006 年才由佐藤玉樹等人在《Palaeontology》正式描述為新屬新種,這是一種生活在約 8500 萬年前的白堊紀晚期 。骨骼上還保存著鯊魚咬痕與鯊魚牙齒,顯示這具遺骸曾遭鯊魚捕食或食腐。
所以《大雄的恐龍》這個片名,用今天的分類學來看其實有個小誤會。
還有哪些動物常被誤認為恐龍?

- 翼龍:恐龍的近親,但不屬於恐龍。真正會飛的恐龍是鳥類。
- 魚龍:外型像海豚的海生爬行動物,屬於另一個獨立支系。
- 滄龍:白堊紀晚期的海洋掠食者,屬於有鱗類,和現代的蛇、蜥蜴同屬一個大支系。
- 異齒龍:背上有帆,比最早的恐龍還早數千萬年出現,屬於合弓類,站在通往哺乳類的那一側。
尼斯湖水怪會是倖存的蛇頸龍嗎?
有沒有好奇這個問題呢?但是,目前沒有任何可靠證據支持這個說法,雖然多數蛇頸龍生活在海洋,世界各地仍有河流、湖泊與低鹽環境的蛇頸龍化石紀錄。例如 2019 年《Journal of Palaeogeography》報導了甘肅金昌中侏羅世河湖相地層中的四顆蛇頸龍牙齒 ,不過研究者也指出,淡水蛇頸龍在全球都相當罕見。
真正的問題是時間。蛇頸龍最後的可靠化石停留在約 6600 萬年前,之後的地層中沒有任何可信紀錄;而尼斯湖是在最近一次冰河退去後才形成的現代湖泊。若蛇頸龍真的存活至今,需要一個延續數千萬年的繁殖族群,卻在全球新生代化石紀錄中完全消失,所以目前沒有任何的證據支持。
懂故事心得
在世界上名字有什麼好好像就是什麼?,但是「名字裡有龍」,不代表就是恐龍。蛇頸龍的祖先在三疊紀重返海洋,把四肢變成像翅膀一樣的鰭;有些種類演化出七十多節頸椎,用四片鰭在水中飛行,還能直接在海裡生下大型幼體。雖然他們不是恐龍,但是牠們和恐龍一起生活,也同時在 6600 萬年前一起消失。所以下一次有人問你說蛇頸龍是恐龍嗎?以學術上的定義來講他就不是恐龍。
更多這樣的故事,訂閱懂故事。
常見問題
Q:蛇頸龍是恐龍嗎?
A:不是。蛇頸龍屬於鰭龍類海生爬行動物,和恐龍位於演化樹的不同分支。
Q:蛇頸龍什麼時候出現、什麼時候滅絕?
A:已知最早的明確骨架約兩億年前(三疊紀末),約 6600 萬年前白堊紀末大滅絕時消失。
Q:蛇頸龍的脖子有幾節?
A:薄片龍約 72 節;阿爾伯塔泳龍原始描述為 76 節,後續研究認為可能是 75 節。人類只有 7 節。
Q:蛇頸龍是胎生還是卵生?
A:胎生。2011 年發表的多錐龍懷孕母體化石提供了直接證據。
Q:哆啦A夢的嗶之助是什麼動物?
A:原型是日本福島縣發現的雙葉鈴木龍,屬於蛇頸龍類,不是恐龍。
Q:尼斯湖水怪可能是蛇頸龍嗎?
A:目前沒有證據支持。蛇頸龍最後的可靠化石距今約 6600 萬年,之後沒有任何可信紀錄。
參考文獻
- Owen, R. (1842). Report on British fossil reptiles, Part II. Report of the British Association for the Advancement of Science, 11, 60–204.
- Nesbitt, S. J. (2011). The early evolution of archosaurs: relationships and the origin of major clades. Bulletin of the American Museum of Natural History, 352, 1–292. https://doi.org/10.1206/352.1
- Wintrich, T., Hayashi, S., Houssaye, A., Nakajima, Y., & Sander, P. M. (2017). A Triassic plesiosaurian skeleton and bone histology inform on evolution of a unique body plan. Science Advances, 3(12), e1701144. https://doi.org/10.1126/sciadv.1701144
- De la Beche, H. T., & Conybeare, W. D. (1821). Notice of the discovery of a new fossil animal, forming a link between the Ichthyosaurus and crocodile. Transactions of the Geological Society of London, 5, 559–594.
- Davidson, J. P. (2002). Bonehead mistakes: the background in scientific literature and illustrations for Edward Drinker Cope’s first restoration of Elasmosaurus platyurus. Proceedings of the Academy of Natural Sciences of Philadelphia, 152, 215–240.
- Sachs, S., Kear, B. P., & Everhart, M. J. (2013). Revised vertebral count in the “longest-necked vertebrate” Elasmosaurus platyurus Cope 1868, and clarification of the cervical-dorsal transition in Plesiosauria. PLoS ONE, 8(8), e70877. https://doi.org/10.1371/journal.pone.0070877
- Kubo, T., Mitchell, M. T., & Henderson, D. M. (2012). Albertonectes vanderveldei, a new elasmosaur (Reptilia, Sauropterygia) from the Upper Cretaceous of Alberta. Journal of Vertebrate Paleontology, 32(3), 557–572.
- Noè, L. F., Taylor, M. A., & Gómez-Pérez, M. (2017). An integrated approach to understanding the role of the long neck in plesiosaurs. Acta Palaeontologica Polonica, 62(1), 137–162. https://doi.org/10.4202/app.00334.2016
- Muscutt, L. E., Dyke, G., Weymouth, G. D., Naish, D., Palmer, C., & Ganapathisubramani, B. (2017). The four-flipper swimming method of plesiosaurs enabled efficient and effective locomotion. Proceedings of the Royal Society B, 284, 20170951. https://doi.org/10.1098/rspb.2017.0951
- O’Keefe, F. R., & Chiappe, L. M. (2011). Viviparity and K-selected life history in a Mesozoic marine plesiosaur (Reptilia, Sauropterygia). Science, 333(6044), 870–873. https://doi.org/10.1126/science.1205689
- Sato, T., Hasegawa, Y., & Manabe, M. (2006). A new elasmosaurid plesiosaur from the Upper Cretaceous of Fukushima, Japan. Palaeontology, 49(3), 467–484. https://doi.org/10.1111/j.1475-4983.2006.00554.x
- Gao, T., Li, D.-Q., Li, L.-F., & Yang, J.-T. (2019). The first record of freshwater plesiosaurian from the Middle Jurassic of Gansu, NW China, with its implications to the local palaeobiogeography. Journal of Palaeogeography, 8(1), 27. https://doi.org/10.1186/s42501-019-0043-5


